Vol. 23 - Núm. 2 ()
28 min
Concentración urinaria y mecanismo multiplicador de contracorriente renal: revisión para estudiantes de fisiología en pre-grado de la carrera de medicina
Urine concentration and the renal countercurrent multiplication mechanism: a review for undergraduate medical physiology students
Sebastián Jaurretche1-3*  , María Luana Brajkovic3, María Victoria Del Rosal MV3, Graciela Venera4
1Departamento de Trasplante, Sanatorio Parque de Rosario, Rosario, Argentina
2Fisiopatología Renal y Trasplante, Instituto de Investigaciones ININVI, Rosario, Argentina
3Biofísica y Fisiología Humana, Escuela de Medicina, Instituto Universitario Italiano de Rosario, Rosario, Argentina
4Departamento de Investigación, Instituto Universitario Italiano de Rosario, Rosario, Argentina
, María Luana Brajkovic3, María Victoria Del Rosal MV3, Graciela Venera4
1Departamento de Trasplante, Sanatorio Parque de Rosario, Rosario, Argentina
2Fisiopatología Renal y Trasplante, Instituto de Investigaciones ININVI, Rosario, Argentina
3Biofísica y Fisiología Humana, Escuela de Medicina, Instituto Universitario Italiano de Rosario, Rosario, Argentina
4Departamento de Investigación, Instituto Universitario Italiano de Rosario, Rosario, Argentina
Recepción:
01/10/2025
Aceptación:
01/10/2025
Publicación:
30/09/2025
Métricas
938
Visualizaciones
52
Descargas
Compartir
Compartir
Resumen (ES)
El mecanismo multiplicador de contracorriente (MMCC) es un pilar esencial en la fisiología renal, clave para comprender los procesos de concentración y dilución de la orina en humanos. A pesar de su relevancia, continúa siendo un tema complejo y en parte controvertido, con múltiples hipótesis que intentan explicar la hiperosmolaridad de la médula renal interna y la papila. Este artículo presenta una revisión narrativa del MMCC, desde sus fundamentos fisiológicos hasta las perspectivas actuales basadas en modelos anatómicos y moleculares recientes. A su vez, se contextualiza su enseñanza en el ámbito académico: en 2023, un análisis del desempeño de estudiantes de fisiología del Instituto Universitario Italiano de Rosario evidenció un conocimiento insuficiente sobre este tema, lo que motivó el inicio de un proyecto de investigación y docencia (CAI ININVI 07/24). Uno de sus objetivos principales es generar bibliografía propia de la cátedra para mejorar el aprendizaje. Esta revisión, dirigida especialmente a estudiantes de grado en medicina, busca ofrecer un recurso accesible y actualizado que integre historia, fisiología comparada y mecanismos celulares involucrados en el MMCC, con el fin de facilitar su comprensión y aplicación clínica futura.
Palabras clave (ES):
Contracorriente
Función tubular
Concentración urinaria
Fisiología renal
Resumen (EN)
The countercurrent multiplication mechanism (CCMM) is a cornerstone of renal physiology and fundamental to understanding the processes of urinary concentration and dilution in humans. Despite its relevance, it remains a complex and partially debated topic, with multiple hypotheses attempting to explain the hyperosmolarity of the inner medulla and renal papilla. This article presents a narrative review of the CCMM, covering its physiological foundations and current perspectives based on recent anatomical and molecular models. It also addresses the academic context: in 2023, an analysis of physiology students’ performance at the Instituto Universitario Italiano de Rosario revealed insufficient understanding of this topic, prompting the launch of a research and teaching project (CAI ININVI 07/24). One of its main goals is to generate original literature for the course to improve learning outcomes. This review, aimed especially at undergraduate medical students, offers an accessible and updated resource that integrates historical background, comparative physiology, and the cellular mechanisms involved in the CCMM, to support better comprehension and future clinical application.
Palabras clave (EN):
Countercurrent
Renal physiology
Urinary concentration
Tubular function
Introducción
El mecanismo multiplicador de contracorriente (MMCC) ha significado un gran desafío para los fisiólogos y nefrólogos a lo largo de los años. Incluso en la actualidad, sus mecanismos no están totalmente comprendidos en detalle y existen diversas hipótesis que intentan explicar la hiperosmolaridad de la médula interna y la papila renal. La comprensión de los estudiantes de medicina de pre y postgrado, del MMCC es fundamental para el entendimiento de la concentración y dilución de urinaria en humanos. En 2023, en la asignatura “Biofísica y Fisiología Humana” de 2.º año de la carrera de Medicina del Instituto Universitario Italiano de Rosario (IUNIR), un 36% de los alumnos respondieron de manera incorrecta las preguntas referidas a los mecanismos de generación de un intersticio renal hiperosmótico. Asimismo, un 57% contestó de forma incorrecta a preguntas referidas a los conceptos básicos de mecanismo e intercambio por contracorriente (datos de los autores, no publicados a la fecha), habiendo adquirido los conocimientos a partir de la bibliografía “tradicionalmente” recomendada por la Cátedra. Debido a lo antedicho, se radicó un proyecto de investigación y docencia denominado “Mecanismo multiplicador por contracorriente del asa de Henle. Impacto del cambio de bibliografía en estudiantes de Fisiología de segundo año de la carrera medicina” (CAI ININVI 07/24) en el cual se plantea la comparación, a futuro, del rendimiento académico de alumnos que adquirieron conocimientos de la bibliografía tradicional de la cátedra versus los que realizaron una revisión multi-bibliográfica. El presente trabajo es una revisión narrativa que sintetiza el funcionamiento y fundamento fisiológico del MMCC. Breve revisión histórica En el final de la era mesozoica, los mamíferos migraron de la vida acuática a la terrestre. Como consecuencia, fueron privados del acceso libre al agua y al sodio. Como consecuencia, la adaptación a esa nueva condición medioambiental, fue conservar la capacidad excretora de “desechos”, aunque por separado, a la conservación y manejo fisiológico del sodio y agua libre, por el sistema renal1. Esta capacidad de producir orina hipertónica solo la han logrado algunas aves y mamíferos, para sobrevivir a condiciones de limitado acceso al agua1. El mecanismo por el que los riñones logran conservar agua libre es complejo y se explica por la especificidad de ciertos segmentos de la nefrona y su vasculatura especializada1. Evolución histórica del concepto En 1842, William Bowman describió la similitud entre las células tubulares renales y el epitelio intestinal, desarrollando el concepto de la separación de la porción acuosa de la sangre y la excreción independiente de sales y agua2,3. Esta teoría “excretora” de la formación de la orina sería conocida más tarde como hipótesis de “Bowman-Heidenhain” (por el apoyo de Rudolf Heidenhain en 1874) o hipótesis “vitalista”. Simultáneamente, en 1842, Carl Ludwing, fisiólogo alemán, introdujo la hipótesis del glomérulo como filtro que producía un ultrafiltrado de la sangre, libre de células y proteínas, pero con el resto de los componentes sin modificaciones respecto al plasma. Describió también que el filtrado glomerular (FG) era influenciado por la presión hidrostática en la arteria renal y que, a su paso por los túbulos uriníferos, sufría procesos que alteraban las concentraciones finales de sustancias en la orina4. Esta teoría fue denominada “mecanicista”. La primera descripción, con similitud a la histología actual de los túbulos renales, se atribuye a Friedrich Gustav Jakob Henle, quien en 1862 describe la porción tubular en “asa” – que, desde entonces, lleva su nombre – en su monografía: “Zur Anatomie der Niere”5,6. Mientras tanto, Homer William Smith se negaba a otorgarle un valor fisiológico a este segmento de la nefrona, ya que lo consideraba un remanente embrionario. Smith, fisiólogo y escritor científico estadounidense, conocido por sus experimentos sobre el riñón, realizó importantes descubrimientos de la fisiología renal. Uno de sus hallazgos más relevantes fue el rol crucial del flujo sanguíneo renal en la homeostasis. En sus trabajos, demostró que los riñones podían autorregular su propio flujo sanguíneo mediante la producción de sustancias vasoactivas y otros mecanismos de ajuste. Smith describió la nefrona como una estructura compleja, compuesta por un glomérulo y la cápsula de Bowman, los que funcionaban en conjunto para “filtrar” los componentes del plasma sanguíneo hacia los túbulos renales. Se inició la idea de que, a medida que el “líquido filtrado” se movilizaba a través de los túbulos renales, se eliminaban los desechos y se reabsorbían los nutrientes y las sustancias esenciales para la homeostasis corporal. Estos son los conceptos de lo que hoy conocemos como “reabsorción” y “secreción” tubular7,8. Durante los siguientes años, coexistieron ambas teorías (“vitalista” y “mecanicista”) en controversia, y los conceptos de Henle fueron, inicialmente, negados. Es por esta razón que, hasta 1950, la nefrona se esquematizaba en forma rectilínea de la siguiente manera (Figura 1), eliminando la idea del “asa” de Henle.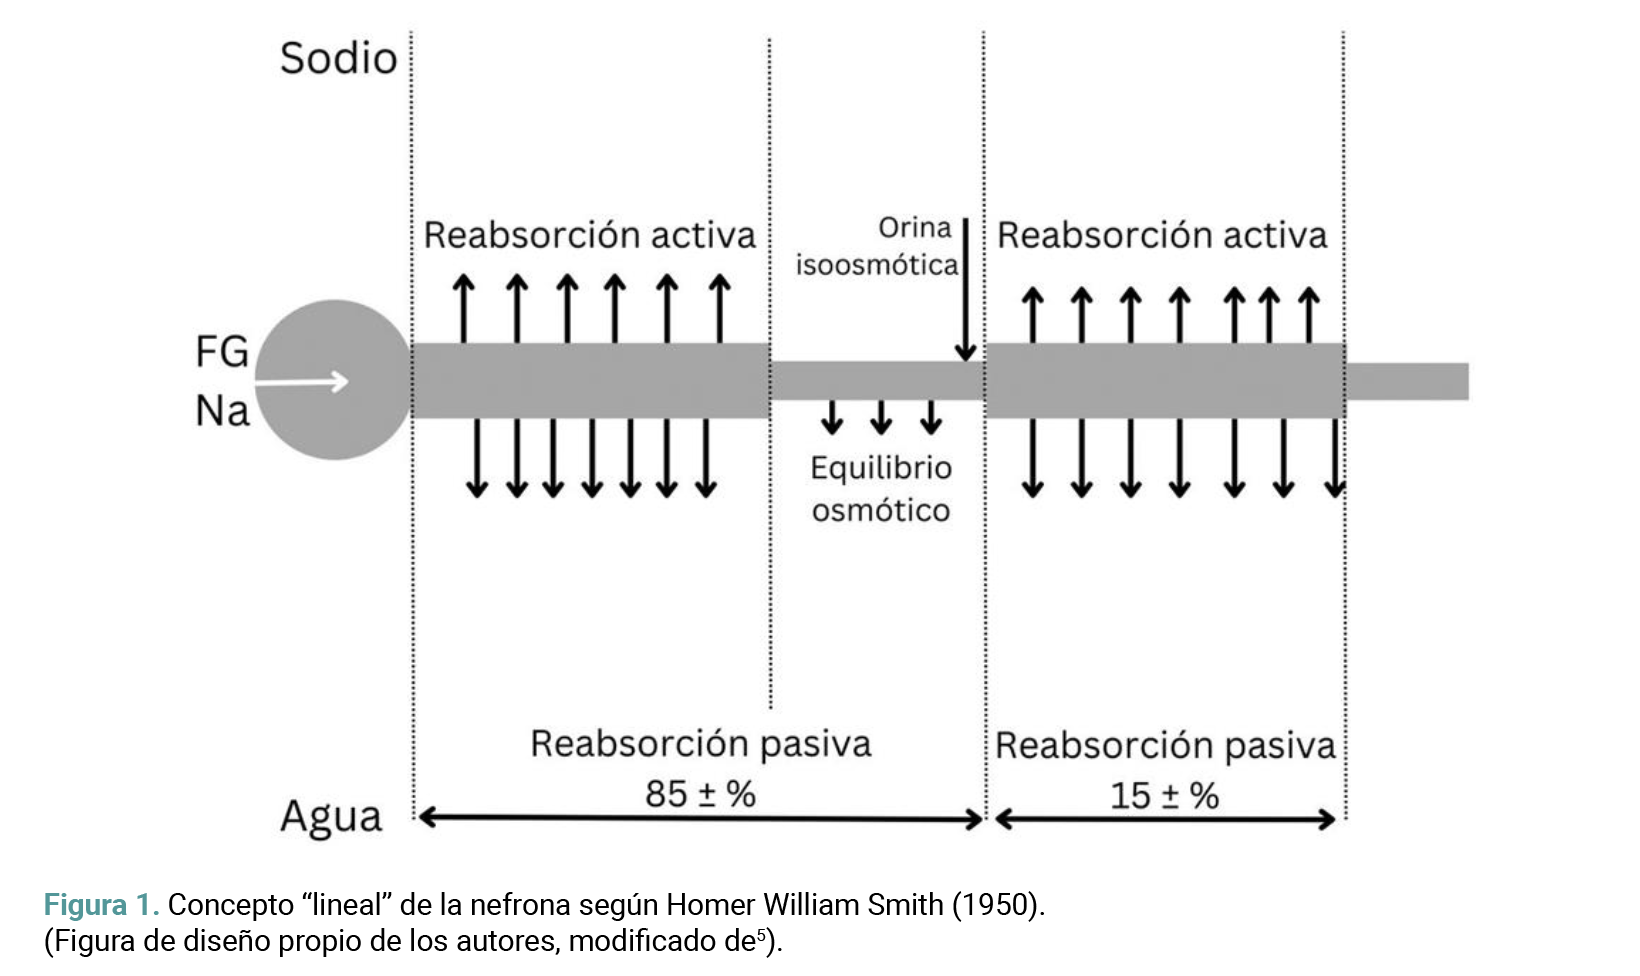 En 1922, Alfred Richards et al. introdujeron un nuevo método de investigación de la función renal denominado técnica de micro-punción, mediante el cual, comprobaron que la hipótesis “mecanicista” era la que mejor explicaba el mecanismo de formación de orina9.
En 1952, Gottschalk et al., con técnicas de micro-punción y micro-osmómetro, demostró que, en roedores, el fluido contenido en el asa de Henle, túbulos colectores y vasos rectos eran hiperosmóticos en la médula renal y tenían igual presión osmótica al mismo nivel10,11. Ampliando sus experimentos, demostraron, que la permeabilidad al agua de la rama delgada descendente (RDD) del asa de Henle (AH) superaba la de la rama delgada ascendente (RDA). Por último, estos experimentos demostraron que la permeabilidad al agua y la concentración de orina en la RDD del AH, era independiente de la presencia de hormona antidiurética (ADH) y que la concentración final de la orina tenía lugar en el túbulo colector (TC) medular10.
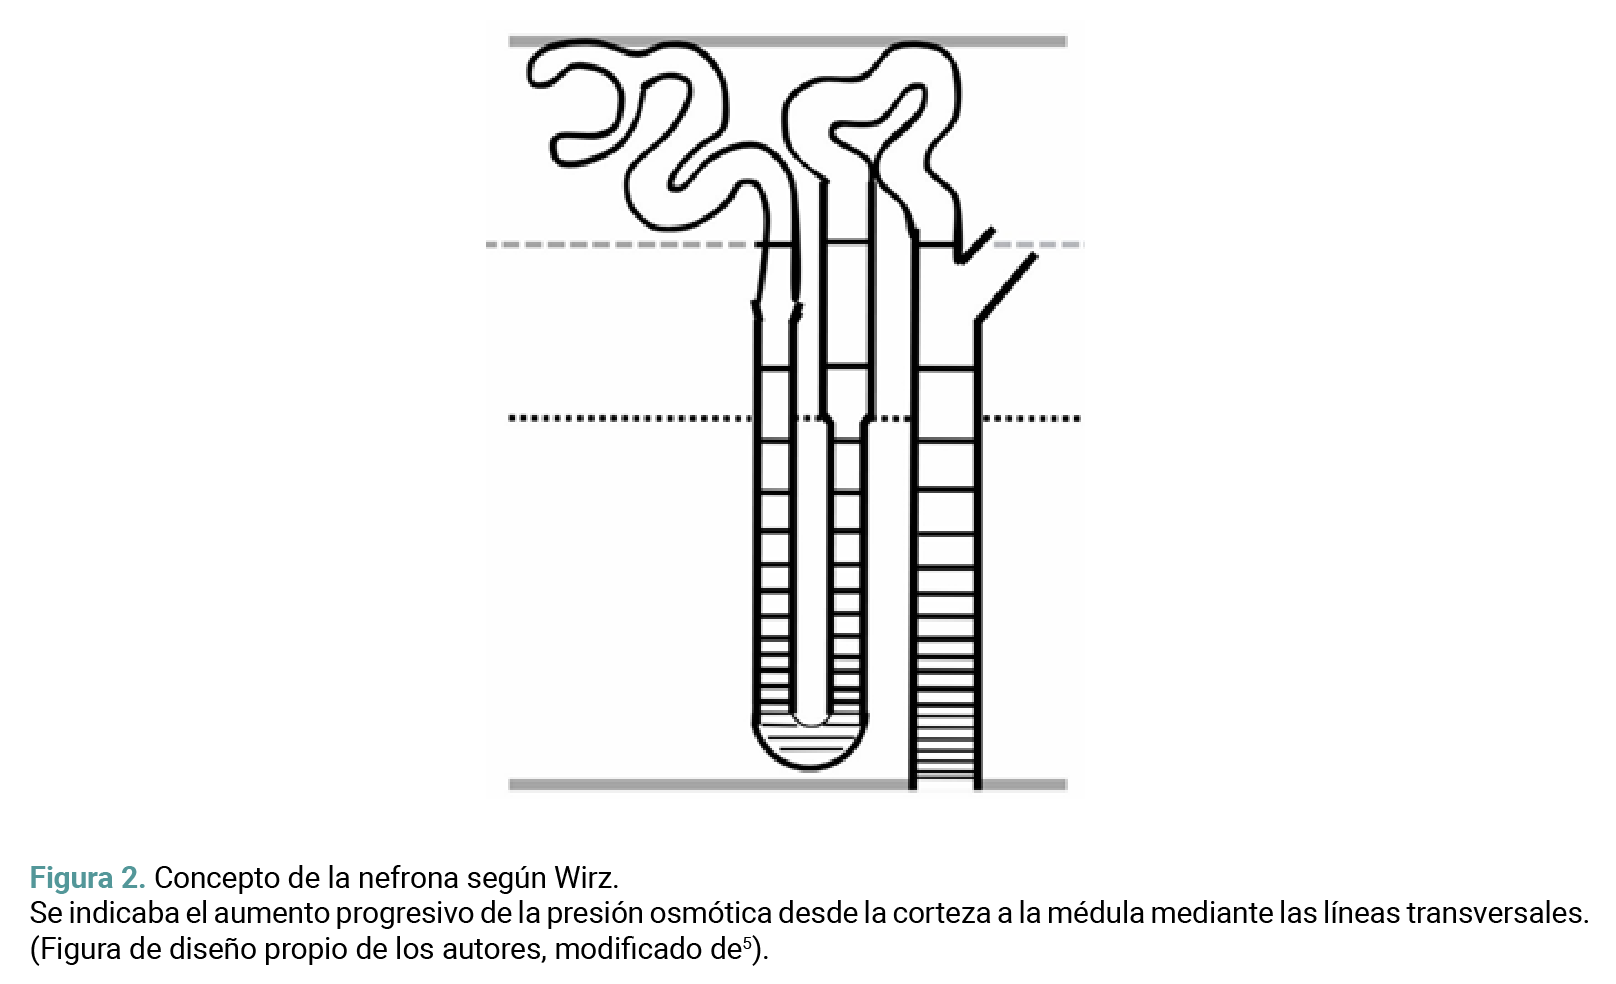
En 1967, el principio conocido como multiplicador por contracorriente es planteado por Heinrich Wirz; mecanismo en que, dos flujos opuestos de líquido tubular (LT), en la rama descendente y en la rama ascendente del AH, jugaban un papel crítico12.
Este concepto surgió de observaciones de que todos los vertebrados pueden eliminar orina isotónica y diluida, pero solo los mamíferos y algunas aves son capaces de excretar orina concentrada y compensar un déficit de agua libre. Para que este concepto fuese posible, la nefrona no podría ser “lineal”, por lo que se abandonó ese esquema y emerge el de “asa”, como la conocemos hoy en día (Figura 2).
 Aspectos generales de la concentración y dilución de la orina a nivel tubular
En circunstancias fisiológicas, la excreción de agua se regula independientemente de la de solutos. Para que esto ocurra, los riñones deben ser capaces de excretar orina hipo o hiperosmótica en relación con el plasma, lo que a su vez exige, que los solutos se separen del agua en algún trayecto a lo largo de la nefrona13-16.
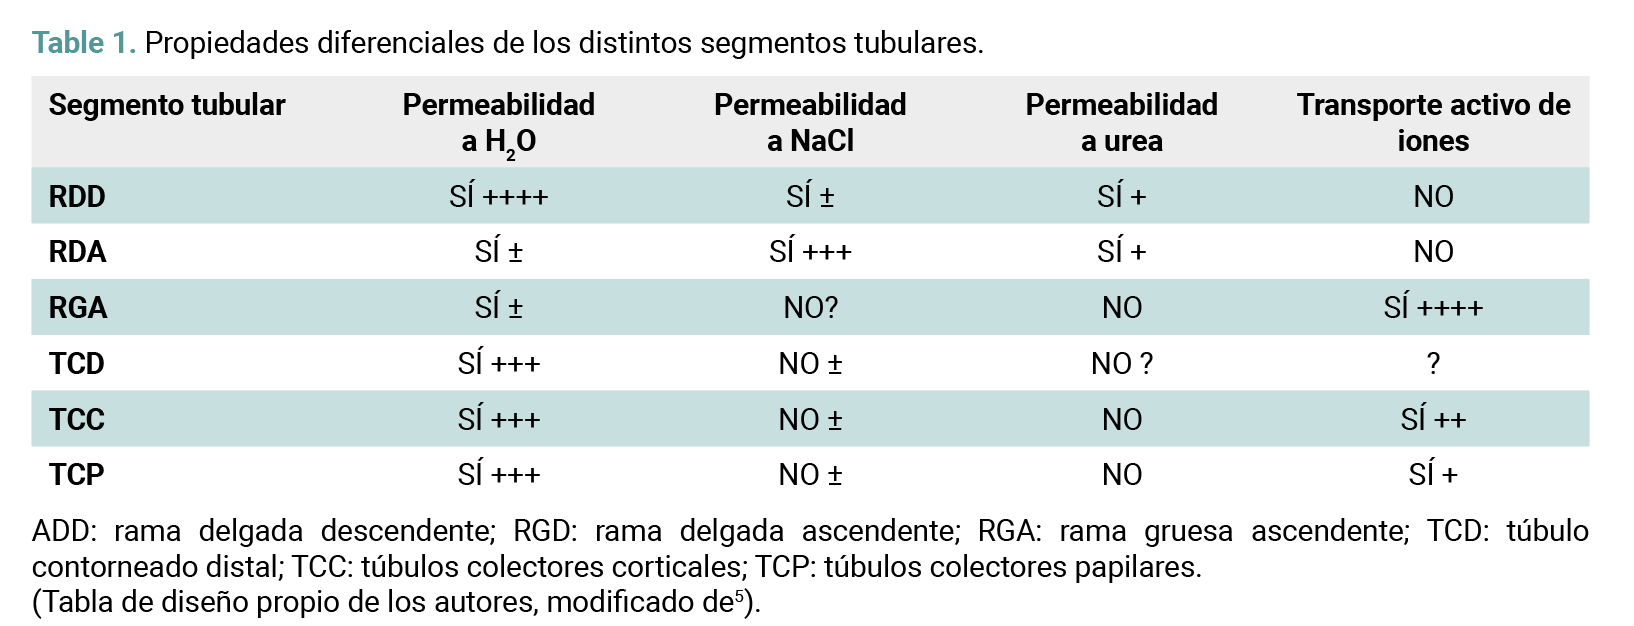
La reabsorción de solutos en el túbulo proximal (TP) condiciona la reabsorción de una cantidad proporcional de agua (segmento de la nefrona permeable al agua y solutos); es decir, en este segmento de la nefrona no se produce separación de los procesos de reabsorción de agua y solutos. En cambio, en el asa de Henle, más especialmente en su rama gruesa ascendente (RGA) (segmento de la nefrona permeable a solutos, pero no al agua) del AH, es donde se produce la separación de la reabsorción de ambos compuestos. Como consecuencia de esta capacidad de separar agua y solutos, el AH cumple dos funciones básicas y fundamentales: i) diluir el LT (lo cual permite excretar orina diluida en ausencia de ADH) y, ii) lograr que el líquido intersticial de la médula renal a este nivel, sea hiperosmótico respecto al plasma; siendo el intersticio hiperosmótico, fundamental para la excreción de orina concentrada, ya que establece un gradiente osmótico a través de la pared del TC y, por tanto, permite la reabsorción de agua, cuando la ADH aumenta la permeabilidad para el agua de las células que revisten el TC (mecanismo de acción de la ADH)13-16. La Tabla 1 muestra las propiedades diferenciales de los distintos segmentos tubulares.
 Características principales del sistema
- El LT que ingresa a la RDD del AH desde el TP es isosmótico respecto al plasma; esto refleja la naturaleza isosmótica de la reabsorción de agua y de solutos en el TP.
- La permeabilidad de la RDD del AH, en cambio, es muy alta al agua, pero mucho menor a la de solutos, NaCl y urea (esto implica mayor posibilidad de reabsorción de agua que de solutos a este nivel). En consecuencia, al ir profundizando el LT en la médula hiperosmótica, se reabsorbe agua. Por ello, el LT tendrá, en la curva del asa, una osmolaridad igual a la del líquido intersticial circundante. Aunque las osmolaridades de ambos líquidos (tubular e intersticial) son similares a este nivel, su composición química es muy diferente; la concentración relativa de NaCl es mayor en el líquido tubular (LT) mientras que la de urea es mayor en el líquido intersticial (LI).
- La rama delgada ascendente (RDA) del AH es impermeable al agua, pero permeable a NaCl y urea. En consecuencia, al ascender el LT por el asa ascendente, se reabsorbe pasivamente NaCl y urea (ya que, por las características antes mencionadas del asa descendente, en el LT del asa ascendente, la concentración de NaCl y urea es mayor que la intersticial), aunque con mayor intensidad se produce reabsorción de NaCl que de urea. El efecto neto en el LT a todo lo largo de la RDA es, entonces, el siguiente: i) el volumen permanece sin cambios, ii) la concentración de NaCl disminuye y iii) la concentración de urea aumenta.
- La RGA del AH, es impermeable al agua y a la urea. Esta porción de la nefrona, en cambio, reabsorbe activamente NaCl y, por lo tanto, diluye el LT. Esa dilución es máxima en este punto de la nefrona (segmento dilutor). El LT que egresa de la RGA tiene una osmolaridad aproximada de 150 mOsm/Kg H2O.
- El túbulo distal (TD) y el TC cortical reabsorben activamente NaCl y son impermeables a la urea. En ausencia de ADH, la permeabilidad de este segmento de la nefrona al agua es baja. Por lo tanto, cuando hay ausencia o niveles bajos de ADH (Osmolaridad plasmática baja), el TD y el TC cortical son impermeables al agua. La osmolaridad del LT en estos segmentos disminuye aún más, al reabsorberse NaCl sin agua. El LT que llega al TC cortical es hipoosmótico respecto al plasma, con una osmolaridad aproximada de 100 mOsm/kg de H2O.
- El TC medular reabsorbe activamente NaCl e incluso en ausencia de ADH es ligeramente permeable al agua y a la urea. En consecuencia, cantidades escasas de urea pasan desde el intersticio medular al LT del TC y se reabsorbe un pequeño volumen de agua.
- En este contexto de ausencia de ADH, se continúa la dilución urinaria y la orina finalmente excretada tendrá una osmolaridad aproximada de 50 mOsm/Kg de H2O.
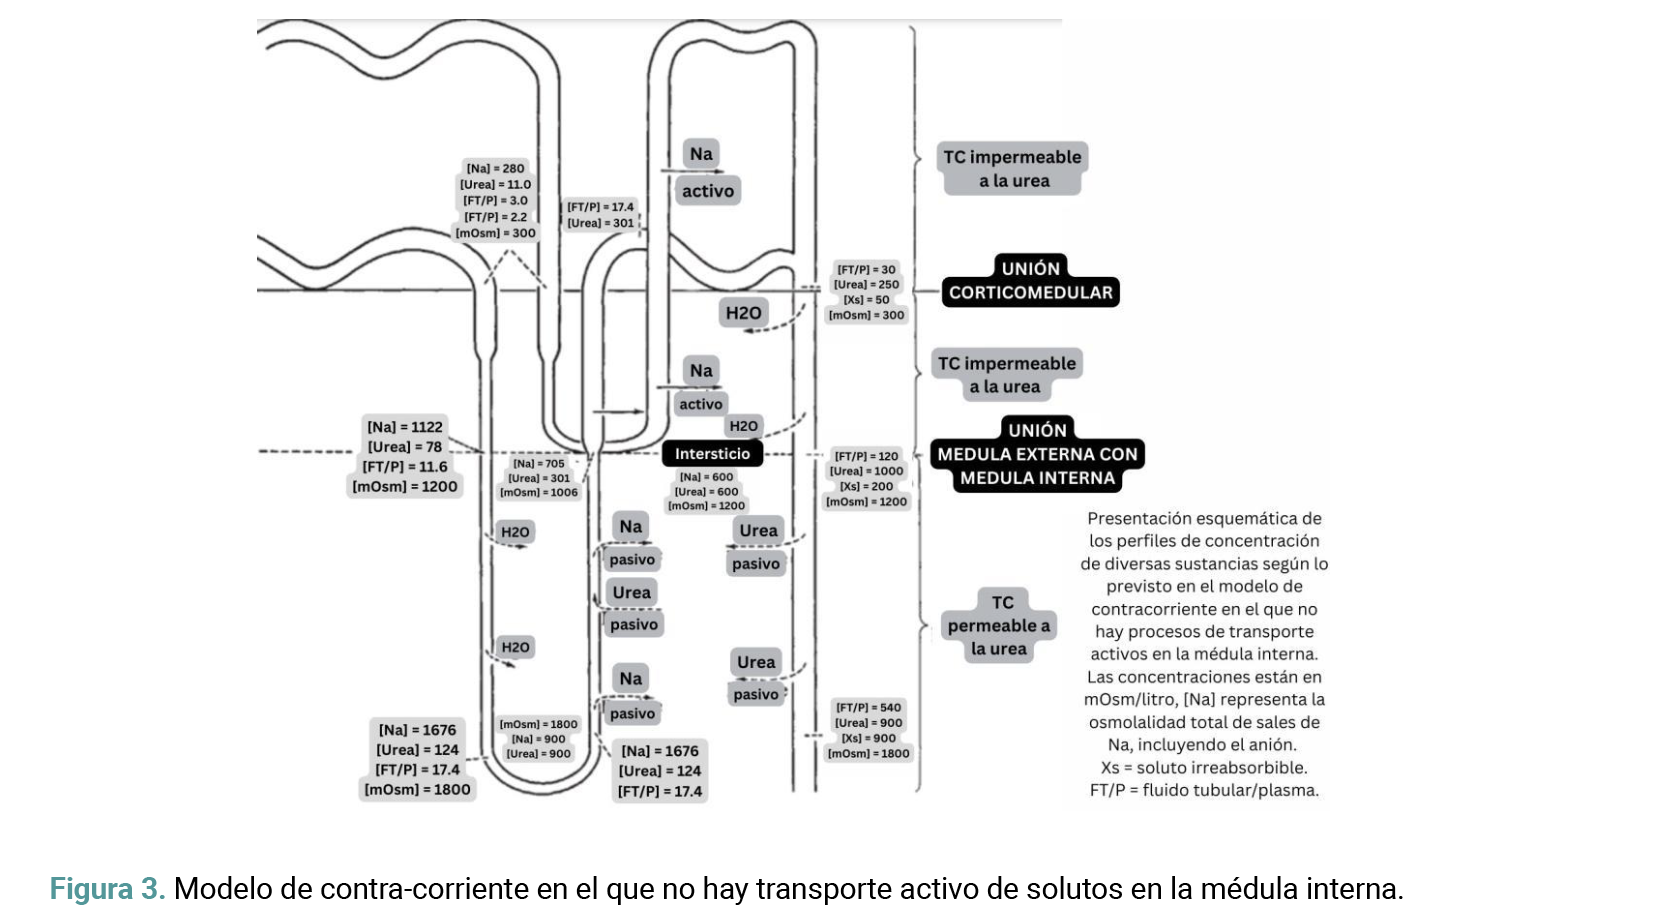 La generación de un intersticio medular hiperosmótico (que depende de la reabsorción de NaCl por la RGA del AH) es de importancia crítica para la capacidad renal de excretar orina hiperosmótica con respecto al plasma. Como se describió anteriormente, los principales determinantes de la osmolaridad del LI son NaCl y urea y la distribución de estos solutos no es uniforme a lo largo de la médula. En la unión entre la médula y la corteza, la osmolaridad es de 300 mOsm/kg de H2O (determinada prácticamente por NaCl). Posteriormente, hacia la profundidad de la médula, las concentraciones de NaCl y urea aumentan progresivamente hasta que, a nivel de la papila es de aproximadamente 1.200 mOsm/Kg de H2O (600 mOsm/Kg de H2O atribuibles al NaCl y 600 mOsm/Kg de H2O atribuibles a la urea). El gradiente de NaCl medular es consecuencia del manejo tubular de este soluto en los distintos segmentos de la nefrona, como se explicó en los apartados anteriores. El acúmulo medular de urea es, sin embargo, más complejo y, se produce con mayor eficacia cuando se produce orina hiperoosmótica. La permeabilidad de la mayoría de los segmentos de la nefrona a la urea es relativamente baja, con excepción del TC medular, especialmente en presencia de ADH. Al avanzar el LT a lo largo del interior de la nefrona, y especialmente al reabsorberse agua en el TC, aumenta la concentración de urea en el LT. Cuando el LT rico en contenido de urea, llega al TC medular, donde la permeabilidad para la urea no es alta, sino que aumenta, especialmente en presencia de ADH. La urea difunde desde el LT al LI (a favor del gradiente de concentración), donde se acumula. Algo de urea entra a las asas ascendente y descendente de Henle (recirculación de la urea, entre en TC y el AH); este proceso también sirve para atrapar y facilitar el acúmulo urea en la médula13-16.
El intersticio hiperosmótico, como se comentó, es fundamental para la concentración del LT en el TC.
La reabsorción es un proceso pasivo que depende del gradiente osmótico; por lo que, la concentración máxima que puede alcanzar la orina es igual a la del intersticio medular a nivel de la papila (aproximadamente 1.200 mOsm/Kg de H2O). Dado que, para la concentración de la orina, es crucial un intersticio hiperosmótico, cualquier variable que reduzca este gradiente (por ejemplo, una dieta hipoproteica), alterará la capacidad del riñón para concentrar la orina al máximo13-16.
Función de los vasos rectos
Los vasos rectos, redes capilares que aportan sangre a la médula, son muy permeables al agua y a los solutos. Al igual que las asas de Henle, los vasos rectos forman una serie de asas paralelas en horquilla dentro de la médula. Aportan nutrientes y O2 a los túbulos medulares y, lo que es más importante, eliminan el exceso de agua y solutos, que pasan continuamente al intersticio medular desde los segmentos medulares de la nefrona, localizados en cada región. La capacidad de los vasos rectos para mantener el gradiente intersticial, depende del flujo de sangre.
A pesar de la disposición en contracorriente (opuesto al sentido del flujo del LT, ver detalle de “mecanismo de contracorriente”, más adelante), un aumento importante del flujo sanguíneo a través de los vasos rectos, acabará por disipar el gradiente medular13-16.
La posibilidad de que el líquido en los vasos rectos ascendentes se vuelva relativamente hipotónico por la operación de gradientes de presión hidrostática, que fuerzan el agua desde los vasos rectos descendentes a los ascendentes, es poco probable por dos razones:
- Los gradientes de presión hidrostática requeridos para generar gradientes osmóticos son mucho mayores de lo que se esperaría razonablemente en la vasa recta.
- Las mediciones directas realizadas por Jamison, Bennett y Berliner7 muestran que, en cualquier nivel dado de la médula, la sangre de los vasos rectos ascendentes está más concentrada que la sangre de los vasos rectos descendentes.
 Multiplicación de contracorriente
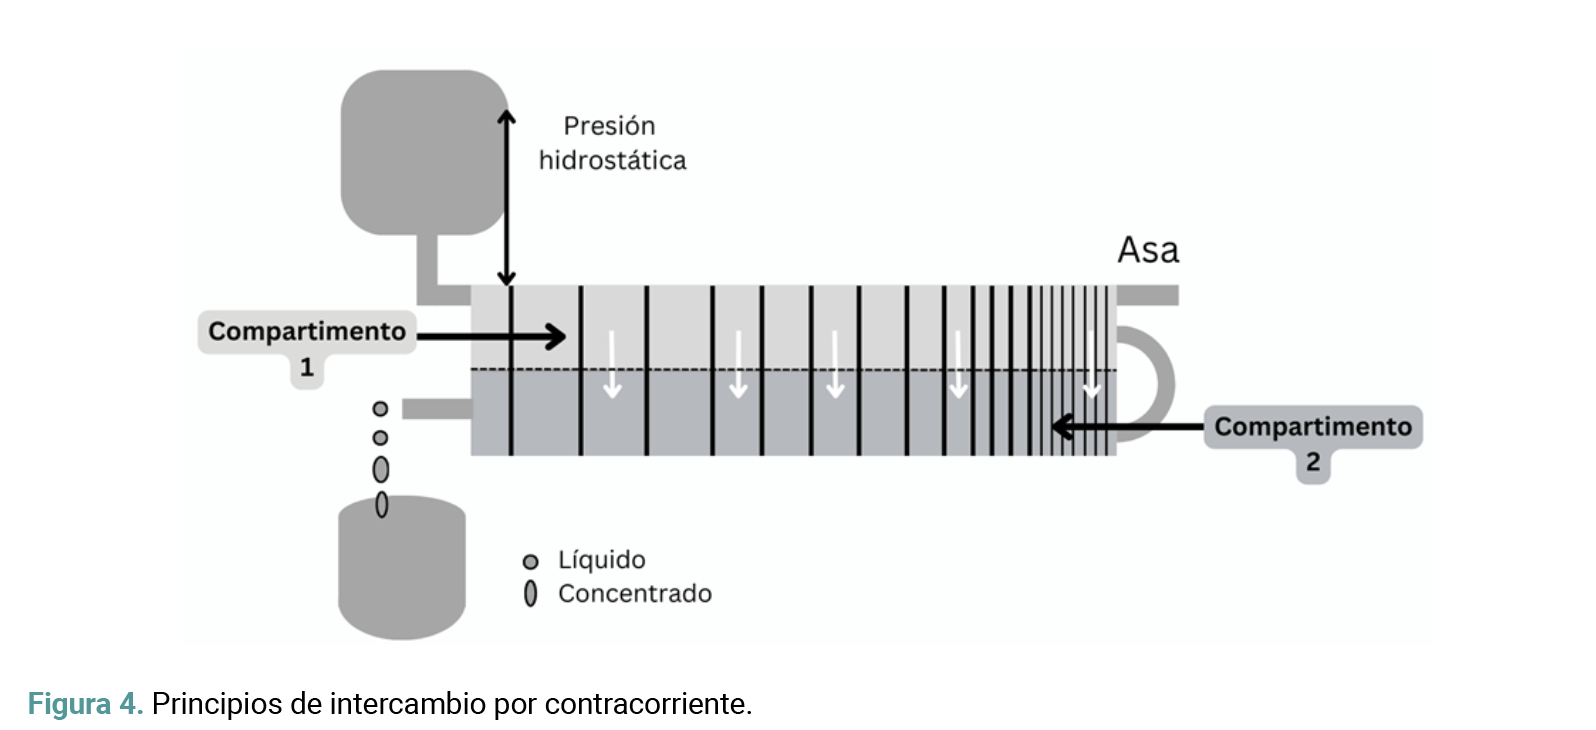
Un sistema multiplicador de contra-corriente puede aumentar enormemente la concentración mediante un simple intercambio osmótico. Un modelo de este tipo debe reunir las siguientes condiciones: a) dos tubos adosados, separados por una membrana semipermeable que permita el pasaje de agua, pero no del soluto, b) el flujo de la solución por ambos tubos del sistema se realiza en sentido opuesto (contra-corriente) y, c) una presión hidrostática que impulsa el líquido13-16.
La presión hidrostática hace circular el líquido por el interior del tubo, pero también determina el pasaje de agua desde un compartimiento a otro, de manera que el líquido, a medida que circula en el compartimiento 1 (C1), se concentra progresivamente. De este modo, la presión osmótica aumenta en dirección al flujo de un extremo a otro del tubo (dentro del mismo C1) y ese aumento de presión osmótica se da en paralelo entre cada sección transversal de ambos tubos, pero en sentido opuesto entre los extremos de cada tubo (menor presión osmótica a la entrada del tubo 1; mayor presión osmótica a la salida del tubo 1; mayor presión osmótica a la entrada del tubo 2; menor presión osmótica a la salida del tubo 1). Se generan entonces cambios transversales de osmolaridad en “capas” que se multiplican longitudinalmente desde la corteza a la médula (en el caso del riñón). (Figura 4).
El asa de Henle, con la disposición de sus ramas ascendente y descendente, presenta las características de un sistema de contra-corriente, aunque con algunas mínimas diferencias respecto al modelo descrito. La fuerza hidrostática es reemplazada por el transporte activo de NaCl en la rama ascendente gruesa y el intersticio medular separa a una rama de la otra. Cabe acarar, además, no todas las asas de Henle presentan la disposición descrita, ya que en el ser humano solo la sexta parte de las asas tienen ramas que llegan hasta el vértice de la papila13-16.
Intercambio de contracorriente
El mantenimiento de la osmolaridad del intersticio medular depende de la particular disposición anatómica de los vasos rectos y de su alta permeabilidad. Su forma en U determina que la sangre que ingresa en la médula renal se encuentre en estrecho contacto con la que egresa de la zona. La alta permeabilidad de estos capilares da lugar a un rápido equilibrio de agua y solutos entre el plasma y el intersticio. La sangre, al descender por los vasos rectos, pierde agua y gana NaCl y urea, de modo que en la parte extrema del asa capilar, la osmolaridad de la sangre del asa se equilibra con la del intersticio. Al ascender, el plasma gana nuevamente agua y pierde solutos, de esta forma se impide el “lavado” de los solutos acumulados en el intersticio por el mecanismo multiplicador del asa de Henle. A este fenómeno se lo denomina intercambio de contracorriente (Figura 4). La sangre que egresa de la médula lo hace con una ligera hiperosmolaridad (325 mOsm/Kg de H2O), dado que el mecanismo intercambiador de contracorriente no es totalmente eficaz. Por esta razón, el “lavado” de solutos del intersticio es directamente proporcional al flujo sanguíneo de los vasos rectos, que es, por otra parte, muy inferior al de la corteza. El flujo sanguíneo medular estaría regulado, en parte, por células contráctiles que rodean a los vasos rectos descendentes. Estas células son sensibles al ADH y posiblemente a otros agentes humorales (angiotensina II, prostaglandinas) y al sistema nervioso simpático13-16.
Integración de los mecanismos componentes del sistema
A nivel renal, este mecanismo es clave para la concentración/dilución de la orina. Durante la anti-diuresis, la orina aparece diluida en el origen del túbulo distal. Pero por la acción de la hormona antidiurética (HAD) se establece un equilibrio osmolar entre la orina y la sangre comprendida en los vasos rectos que rodean a los túbulos que conforman la nefrona desde la mitad del túbulo distal, a partir del cual la orina permanece isosmótica hasta que ingresa al TC y durante su trayecto se concentra progresivamente13-16.
En diuresis acuosa (ausencia de HAD), por el contrario, la orina permanece hipotónica desde que penetra al túbulo contorneado distal y se diluye aún más en el trayecto del túbulo colector, que es impermeable al agua y además le sustrae sodio a esta orina, ya de por sí diluida. Este proceso, hoy conocido y simplificado en la actualidad, que figura incluido en los textos de fisiología humana, se explica por medio de la hipótesis del “mecanismo multiplicador por contracorriente del asa de Henle”. Se trata de un modelo matemático que contempla principios físicos y fisiológicos capaces de dar cuenta de casi la totalidad del proceso de concentración de orina en seres vivos, con excepción de ciertos mamíferos con capacidad de sobrevivir a condiciones extremas de deshidratación (hidropenia), por poder excretar orinas extremadamente concentradas13-16.
Todo este sistema es posible por la existencia de los “vasa recta”. Las reconstrucciones tridimensionales funcionales de los vasos rectos de la médula interna revelan varias relaciones espaciales que pueden ser significativas para el proceso de intercambio contracorriente vascular y el mecanismo de concentración urinaria. Estudios previos han demostrado que los grupos de conductos colectores forman el motivo organizador en la médula interna, con nefronas y vasos dispuestos dentro y alrededor de ellos de manera organizada. Esta arquitectura conduce a dos compartimentos intersticiales distintos en la dimensión transversal: las regiones inter-clusión e intra-clusión intersticial. Estos vasos podrían estar posicionados de manera única para participar en el intercambio contracorriente13-16.
El flujo sanguíneo en la médula interna es un proceso dinámico que involucra múltiples mecanismos regulatorios dentro de una arquitectura fija. Las tasas y los patrones de flujo sanguíneo probablemente influyen en el grado en que los fluidos y solutos derivados de diferentes compartimentos endoteliales y epiteliales se mezclan entre sí y en la magnitud del intercambio contracorriente de fluidos y solutos que ocurre dentro de cada haz vascular13-16.
En líneas generales, el sistema opera para establecer un gradiente de concentración osmótica en el intersticio, que aumenta desde la unión cortico-medular hasta la punta del asa, y para concentrar la orina mediante la absorción pasiva de agua a través de los conductos colectores permeables al agua. Los “vasa recta” actúan como intercambiadores de contracorriente simples, promoviendo la eficiencia general y llevándose en las arterias ascendentes el agua extraída de la orina13-16.
El LT que llega desde el TP es isosmótico, pero al penetrar en la médula pierde agua y se concentra progresivamente hasta alcanzar, en el vértice de la papila, la misma osmolaridad que existe en el intersticio (1.200 mOsm/Kg de H2O en el ser humano). Como se ha explicado, la contribución de la difusión de NaCl y de urea hacia el interior del asa es pequeña. El LT en el codo del asa tiene la misma osmolaridad que el intersticio, pero a expensas del aumento de la concentración de NaCl, mientras que hacia la punta de la paila, en el propio intersticio renal, la osmolaridad se debe, en situación de anti-diuresis, en un 40 % a la acumulación de la urea13-16.
El resultado final del mecanismo multiplicador de contracorriente es la producción de un intersticio hiperosmótico que proveerá el gradiente necesario para la reabsorción de agua en el TC. Este proceso es pasivo, pero depende en último término del transporte activo de NaCl a nivel de la rama ascendente gruesa13-16.
Hipótesis para explicar la hiperosmolaridad de la médula interna y la papila. Teoría de Kokko y Rector
Es el modelo actualmente “más aceptado” y describe un modelo de multiplicación contracorriente en donde tanto el asa de Henle descendente y el asa delgada ascendente operan puramente de forma pasiva, equilibrando los segmentos. Para que este modelo sea posible, deben coexistir ciertas características de cada segmento tubular, como se comentó en la sección “Características principales del sistema”. Los conceptos que se describieron previamente en este trabajo fueron basados en este modelo, el cual plantea que el proceso primario se genera por la salida de NaCl en la rama ascendente delgada. Esto se expresa por la alta concentración de urea en el exterior de la médula del conducto distal que se transmite a la papila a través de la urea que difunde por su gradiente de concentración. A su vez, la urea intersticial papilar abstrae agua de la rama descendente delgada, generando altas concentraciones intraluminales de NaCl, lo que permite que todo el sistema funcione mediante la difusión pasiva de NaCl desde la rama ascendente delgada.
Para que este modelo se cumpla es necesario que el asa ascendente delgada, sea más permeable al NaCl que a la urea y relativamente impermeable al flujo osmótico del agua: así puede generar fluido hipo-osmótico de manera pasiva permitiendo un flujo neto de NaCl del LT al intersticio mayor que el desplazamiento opuesto de la urea.
Entonces, a medida que el LT hipertónico con alta concentración de sal y baja concentración de urea asciende por la rama delgada ascendente del asa de Henle, hacia una región de hipertonicidad intersticial ligeramente menor, existen tres fuerzas motrices importantes:
1. Una pequeña fuerza osmótica para el flujo de agua hacia el LT.
2. Un gran gradiente de concentración para la difusión de urea hacia el LT.
3. Un gran gradiente de concentración para la difusión de NaCl hacia el intersticio.
Si la permeabilidad al flujo osmótico de agua fuera relativamente baja y la permeabilidad a NaCl fuera mayor que a la urea, habría relativamente poco movimiento de agua y el movimiento neto de NaCl al intersticio, superaría al movimiento neto de urea hacia el LT.
Como consecuencia de esta difusión pasiva de NaCl al hacia el intersticio, el LT se volvería hipotónico en relación al líquido circundante.
Perspectivas adicionales al modelo “clásico”
En el concepto del clásico MMCC anteriormente descrito, el LI hiperosmótico se genera por transporte activo de NaCl en la RGA (impermeable al agua). Esto explicó la hiperosmolaridad en la médula externa, pero era insuficiente para elucidar el gradiente osmótico en la médula interna. Posteriormente, fue descrito que, en este sector medular, el mecanismo es “pasivo”, debido a la concentración de urea en el LI por reabsorción pasiva de NaCl y agua, los TC (impermeables a la urea)18,19. El descubrimiento de transportadores de urea (UT-A1, UT-A3), regulados por vía ADH, modificó algunos conceptos “clásicos” del MMCC. Dichos transportadores permiten el pasaje de urea desde los TC al LI, una acción de la ADH diferente a la clásicamente conocida del aumento de la permeabilidad al agua en los TC a través de canales aquaporinas (AQP1)20.
Por último, importantes hallazgos fueron reportados por Dantzler et al., quienes obtuvieron reconstrucciones tridimensionales de RDD y RDA del AH y “vasa recta” en la médula interna de riñones de roedores [20]. En sus experimentos demostraron que asumir que el conjunto de TC es altamente permeable al agua, es incorrecto. Sus resultados mostraron que los TC de AH que tienen sus bucles dentro del primer milímetro de la medular interna (aproximadamente un 40 % de las AH en la medular interna), no expresan canales AQP1 en toda su longitud, mientras que los TC de bucles más largos (60 % restante), expresan canales AQP1 solo en el 40 % inicial de su longitud20.
La presencia del canal de cloruro ClC-K1 comienza en el segmento pre bucle de la RDD y continúa a lo largo de la RDA, lo que explica la alta permeabilidad al cloruro del AH20.
Otro de sus hallazgos más relevantes fue la caracterización tridimensional del sistema tubular y de los vasos rectos en la médula interna renal. Los autores observaron que los túbulos colectores tienden a converger progresivamente desde la corteza hacia la médula, conformando agrupaciones organizadas denominadas “clústeres”. Dentro de estos clústeres, las ramas delgadas descendentes (RDD) del asa de Henle y los vasos rectos descendentes se localizan en las zonas periféricas —área que los investigadores denominaron “inter-cluster”—, mientras que, las ramas delgadas ascendentes (RDA) y los vasos rectos ascendentes se distribuyen tanto en las regiones periféricas como en el eje central del clúster, área denominada “intra-cluster”20. Esta disposición particular de las RDA, los vasos rectos ascendentes y los túbulos colectores generan espacios nodales intersticiales, delimitados por células intersticiales laterales, que configuran microdominios especializados para el intercambio de solutos y agua20.
Estos avances contribuyen de manera significativa a enriquecer y profundizar los modelos clásicos del mecanismo multiplicador de contracorriente. A pesar de los conocimientos acumulados, el funcionamiento completo de este sistema sigue sin estar totalmente esclarecido, lo que convierte a estos nuevos hallazgos en piezas clave para comprender su complejidad estructural y funcional.
Financiamiento
Esta investigación no recibió ninguna subvención específica de agencias de financiamiento de los sectores público, comercial o sin fines de lucro.
Conflicto de intereses
Los autores declaran no presentar conflicto de intereses.
Referencias
- Koulouridis E, Koulouridis I. The loop of Henle as the milestone of mammalian kidney concentrating ability: a historical review. AMHA. 2014;12(2):413–28.
- Richards AN. Physiology of the kidney. Bull N Y Acad Med. 1938;14:5–20.
- Smith HW, Goldring W, Chasis H. The measurement of the tubular excretory mass, effective blood flow and filtration rate in the normal human kidney. J Clin Invest. 1938;17:263–78.
- Davis JM, Thurau K, Haberle D. Carl Ludwig: the discoverer of glomerular filtration. Nephrol Dial Transplant. 1996;11:717–20.
- Morel F. The loop of Henle, a turning-point in the history of kidney physiology. Nephrol Dial Transplant. 1999;14:2510–5.
- Peña RJC. La sabiduría del riñón II. La concentración de la orina y el mecanismo multiplicador por contracorriente del asa de Henle. Acta Med Grupo Angeles. 2021;19(2):304–12.
- National Academy of Sciences. Smith HW. [Internet]. [citado 1 de abril de 2023]. Disponible en: http://www.nasonline.org/publications/biographical-memoirs/memoir-pdfs/smith-homer.pdf
- Navar LG. The legacy of Homer W. Smith: mechanistic insights into renal physiology. J Clin Invest. 2004;114(8):1048–50.
- Richards AN, Plant OH. Urine formation in the perfused kidney: the influence of alterations in renal blood pressure on the amount and composition of urine. Am J Physiol. 1922;59(1):144–83.
- Gottschalk CW. History of the urinary concentrating mechanism. Kidney Int. 1982;31:507–11.
- Valtin H. Carl W. Gottschalk’s contribution to elucidating the urinary concentrating mechanism. J Am Soc Nephrol. 1999;10:620–7.
- Wirz H. Countercurrent principle. In: Symposium on Biophysics and Physiology of Biological Transport: Frascati, June 15–18, 1965. Proceedings. Berlin: Springer; 1967. p. 322–7.
- Koeppen BM. Berne y Levy. Fisiología. Madrid: Elsevier Health Sciences; 2024.
- Houssay BA, Lewis JT, Orías O, Hug E, Braun Menéndez E, Foglia VG. Fisiología humana. 2021.
- Hall JE, editor. Guyton y Hall. Tratado de fisiología médica. Madrid: Elsevier Health Sciences; 2021.
- Barrett KE. Ganong, fisiología médica. 25.ª ed. McGraw-Hill Interamericana; 2016.
- Jamison R, Bennett CM, Berliner RW. Countercurrent multiplication by the thin loops of Henle. Am J Physiol. 1967;212(2):357–66.
- Kokko JP, Rector FC Jr. Countercurrent multiplication system without active transport in inner medulla. Kidney Int. 1972;2:214–23.
- Stephenson JL. Concentration of urine in a central core model of the renal counterflow system. Kidney Int. 1972;2:85–94.
- Dantzler WH, Layton AT, Layton HE, Pannabecker TL. Urine-concentrating mechanism in the inner medulla: function of the thin limbs of the loops of Henle. Clin J Am Soc Nephrol. 2014;9(10):1781–9.
Explorar
Artículos
Volúmenes
Sobre la revista
Más leídos
Consenso argentino de síndrome urémico hemolítico atípico. Sociedad Argentina de Nefrología, 2025
Nefrología Argentina
Concentración urinaria y mecanismo multiplicador de contracorriente renal: revisión para estudiantes de fisiología en pre-grado de la carrera de medicina
Nefrología Argentina
Recomendaciones para el diagnóstico, tratamiento y seguimiento de la enfermedad de Fabry en Argentina 2025
Nefrología Argentina
Comparación de diferentes estrategias para controlar el dolor intradiálisis: un ensayo clínico aleatorio
Nefrología Argentina
Cribado y algoritmo diagnóstico de nefropatías metabólicas hereditarias en recién nacidos
Nefrología Argentina